
Les aiguillons chez le rosier, un sujet épineux
« La vie est une rose dont chaque pétale est une illusion et chaque épine une réalité. », Alfred de Musset
Couramment, les rosiers sont décrits comme possédant des « épines ». Ces « épines » sont en réalité des aiguillons, facilement détachables, contrairement aux vraies épines. En botanique, une épine est une excroissance lignifiée et vascularisée. Il s’agit donc d’organe modifié comme une feuille chez l’acacia, ou comme une tige chez les agrumes (Citrus). Une observation, même rapide, des « épines » de rosier montre une origine bien différente. En l’absence de tissu vasculaire, il ne s’agit pas d’épines au sens strict. On parle alors d’aiguillons ou de trichomes selon leur origine : sous-épidermique ou épidermique respectivement. Dès lors, doit-on parler d’aiguillons ou de trichomes chez le rosier ?
Épines, aiguillons, trichomes…
Cette question a longtemps été débattue. Une étude histologique menée chez un descendant de Rosa wichurana a clairement montré une origine sous-épidermique des aiguillons présents sur la tige (Figure n° 1, (Zhou et al., 2021)). À un stage très précoce du développement de la tige, des divisions cellulaires ont lieu juste en dessous du protoderme[1]. Elles forment un méristème spécifique qui, après une phase d’élongation, donne naissance à un aiguillon, lequel se lignifie ensuite. Sur cette même variété de rosier, un second type d’aiguillon est observé. Également d’origine sous-épidermique, il est plus petit et se termine rapidement par une glande, on parle alors d’aiguillon glanduleux (Figure n° 1). Ces résultats remettent en cause les hypothèses précédemment émises selon lesquelles les aiguillons seraient des trichomes modifiés (Kellogg et al., 2011).
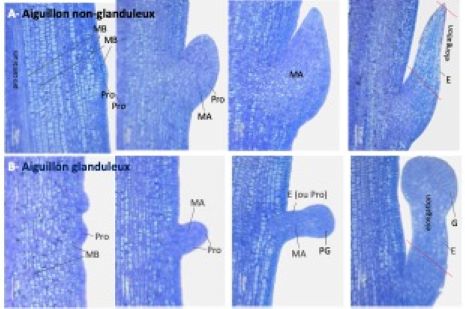
Figure 1 : Anatomie d’un aiguillon non-glanduleux (A) et glanduleux (B). MB : méristème basal, Pro : protoderme, MA : méristème de l’aiguillon, PG : précurseur de la glande, G : glande, E : épiderme (d’après Zhou et al., 2021).
Une grande diversité chez le rosier
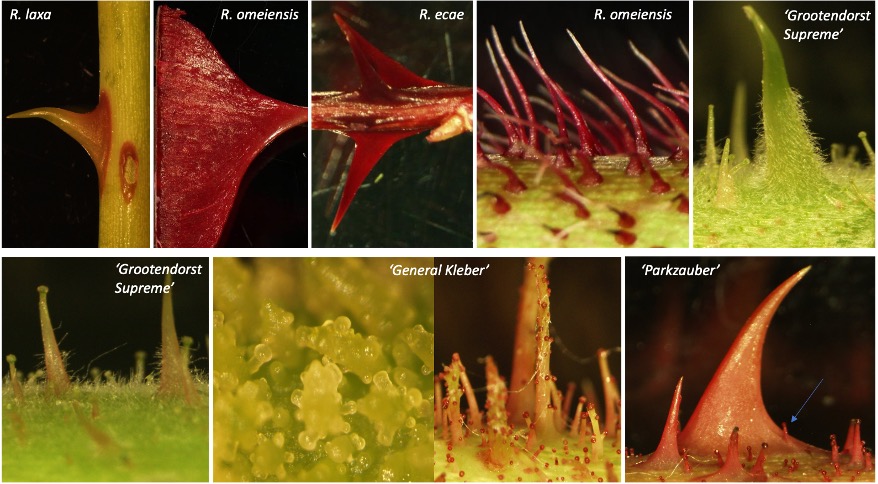
Une simple visite dans une roseraie permet de constater l’importante diversité d’aiguillons existants chez le rosier. Ceux-ci ont été regroupés en deux grandes catégories : les aiguillons glanduleux et non glanduleux (Zhou et al., 2021). Certains aiguillons présentent des ramifications sur les aiguillons, qu’ils soient glanduleux ou non. La Figure n° 2 illustre cette diversité. Il est à noter que les analyses histologiques n’ont pas été réalisées pour l’ensemble de ces rosiers ; l’origine sous-épidermique n’est donc pas systématiquement démontrée.
Les rosiers moussus (par exemple ‘Quatre Saisons Blanc Mousseux’) constituent un cas particulier. Ils présententune forte densité de trichomes sur le pédoncule floral et les sépales(Caissard et al., 2006). Ces trichomes peuvent eux-mêmes porter d’autres trichomes et sécrètent des composés odorants, notamment des substances résineuses à odeur de pin comme l’oléosine.
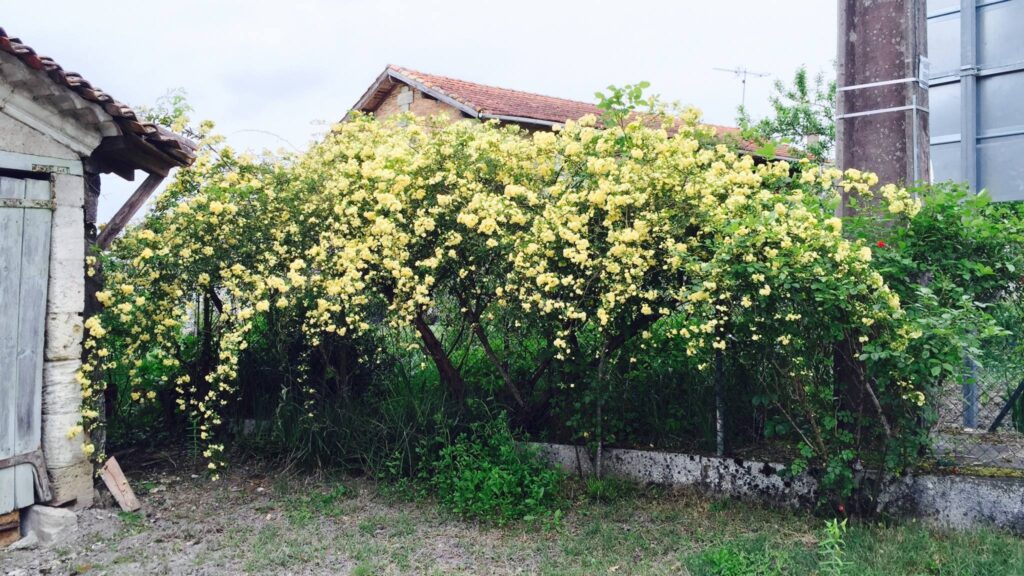
Il existe aussi des rosiers ne présentant pas d’aiguillon ; on parle de rosiers glabres comme les différentes formes de R. banksiae (Rosier de Banks).
Quel rôle chez le rosier ?
Ces excroissances constituent souvent une barrière de défense contre divers stress, biotiques ou abiotiques. Chez le rosier, plusieurs fonctions ont été proposées. Les aiguillons interviendraient dans la protection contre les herbivores, tels que les chenilles ou les mammifères (Belovsky et al., 1991). Ils pourraient jouer un rôle dans l’adaptation à la sécheresse : les aiguillons pouvant potentiellement stocker de l’eau. Cette hypothèse intéressante est encore débattue (Zhong et al., 2021).
Il a également été suggéré que les aiguillons pourraient héberger des micro-organismes (bactéries ou champignons) susceptibles d’infecter un prédateur en cas de blessure. Chez l’humain, des infections liées à des blessures par aiguillons ont effectivement été documentées, notamment par Staphylococcus aureus(Simmons et al., 2017).
Au cours de la domestication et de la sélection, les aiguillons ont pu être favorisés dans certains contextes, par exemple pour constituer des haies défensives. À l’inverse, ils sont aussi sources de problèmes pour la production de fleurs coupées, où l’obtention de roses sans aiguillons est recherchée afin d’éviter les blessures et les dommages mécaniques.
Quels sont les gènes qui contrôlent la présence des aiguillons de rosiers ?
Des approches génétiques ont permis d’identifier un gène majeur contrôlant la présence d’aiguillons sur la tige (Zhou et al., 2020). D’autres régions génétiques contrôleraient la densité des aiguillons sur la tige (Bourke et al., 2018; Zhou et al., 2020; Zhong et al., 2021). Pendant longtemps, les bases moléculaires de ce caractère restaient mal comprises.
Basées sur des comparaisons d’expression entre des rosiers glabres et d’autres avec aiguillons, des hypothèses avaient été émises concernant l’implication d’un complexe protéique, TTG1 / GLABROUS1 / GLABROUS3 (Hibrand Saint-Oyant et al., 2018; Zhong et al., 2021). Ce complexe est connu chez Arabidopsis thaliana pour contrôler l’initiation des trichomes. Cette hypothèse n’a pas été validée par des approches fonctionnelles ou par la mise en évidence de mutations.
Des travaux récents, débutés chez l’aubergine (Solanum melongena), ont apporté unéclairage nouveau. L’absence d’aiguillon est liée à une mutation du gène LOG1 (LONELY GUY 1), impliqué dans la biosynthèse des cytokinines (Satterlee et al., 2024). Seize mutations indépendantes ont été découvertes chez l’aubergine, toutes sont liées à l’absence d’aiguillons. De plus, l’édition de formes mutées du gène (par la technique CRISPR-Cas9) a permis d’obtenir des plantes sans aiguillons chez plusieurs espèces de morelles (Solanum prinophyllum, S. cleistogamum et S. aethiopicum).
Cette étude a montré que des homologues du gène LOG1 étaient impliqués dans le contrôle de l’initiation d’excroissances chez des plantes en dehors de la famille des Solanacées comme le riz ou l’orge (Poacées), le jujubier de Chine (Rhamnacées), le cléome de Hassler (Cléomacées) ou le rosier (Rosacées). Chez ce dernier, l’homologue de LOG1 se trouve génétiquement prochedu gène majeur contrôlant la présence des aiguillons (Satterlee et al., 2024). Toutefois la comparaison des séquences entre des rosiers glabres et d’autres avec aiguillons n’a pas permis de mettre en évidence de mutations au sein du gène. L’expression du gène est élevée dans les tissus portant des aiguillons (comme la variété ‘Old Blush’) et faible chez les variétés glabres (comme R. wichurana ‘Basye’s Thornless’. L’extinction du gène mène à des tiges sans aiguillons. Ainsi LONELY GUY 1 contrôlerait l’initiation d’aiguillon chez le rosier, suggérant l’importance des cytokinines dans l’initiation des aiguillons.
Cette étude est un très bel exemple de convergence évolutive, où un même gène est recruté indépendamment dans différentes lignées (Satterlee et al., 2024). Chez le rosier, plusieurs questions restent ouvertes : nature des mutations impliquées (dans une région promotrice ?) ou diversité des allèles (autres allèles au même locus comme chez l’aubergine ou plusieurs gènes).
[1] Au niveau de la tige, le protoderme est le tissu méristématique primaire le plus externe du méristème apical caulinaire. Il est constitué d’une ou de quelques assises de cellules indifférenciées situées à la surface des jeunes organes en formation.